МОРФОМЕТРИЧЕСКИЕ ИЗМЕНЕНИЯ КОРЫ И ЗУБЧАТОГО ЯДРА МОЗЖЕЧКА КРЫС ПОСЛЕ НАНЕСЕНИЯ ДЕФЕКТА БОЛЬШЕБЕРЦОВОЙ КОСТИ НА ФОНЕ ПРЕДШЕСТВУЮЩЕГО ВВЕДЕНИЯ БЕНЗОАТА НАТРИЯ И ТАРТРАЗИНА
Введение
Бензоат натрия (Е211) и тартразин (Е102) - один из самых распространенных консервантов и синтетический азокраситель, поступление которых с пищей носит длительный и практически повсеместный характер [1]. Допустимая суточная доза (ДСД) бензойной кислоты и ее солей, установленная Объединенным комитетом экспертов ФАО/ВОЗ по пищевым добавкам (JECFA), в 2021 г. увеличена с 0–5 до 0–20 мг/кг массы тела в пересчете на бензойную кислоту [2]; ДСД тартразина в 2016 г. повышена с 0–7,5 до 0–10 мг/кг [3]. В эксперименте бензоат натрия нарушает у мышей память и координацию движений и вызывает оксидативный стресс в головном мозге [4]; у крыс при 28-суточном введении он повышает содержание продуктов перекисного окисления липидов, фактора некроза опухоли α и активность каспазы-3 в стриатуме, гиппокампе, лобной коре и мозжечке [5]. Тартразин приводит к дегенеративным изменениям нейронов и реактивному астроглиозу в мозжечке [6; 7], а его нейротоксичность связывают с окислительным повреждением и апоптозом [8].
Травма опорно-двигательного аппарата сопровождается системной воспалительной реакцией, запускающей репаративный остеогенез [9]. На моделях перелома большеберцовой кости у грызунов показаны активация микроглии и астроцитов, повышение содержания провоспалительных цитокинов и утрата синапсов в головном мозге [10; 11]. Двунаправленная связь центральной нервной системы и скелета в настоящее время рассматривается в рамках концепции оси «мозг - кость» [12]. Ранее авторами установлено, что дефект большеберцовой кости сам по себе вызывает изменения структуры коры мозжечка крыс [13], а также описаны различия ультраструктуры крупных и малых нейронов латерального (зубчатого) ядра мозжечка [14], которые могут по-разному реагировать на повреждающие воздействия. Вместе с тем остается неясным, как предшествующее длительное введение пищевых добавок изменяет ответ мозжечка на костную травму и взаимодействуют ли эффекты двух факторов.
Цель исследования
Оценить морфометрические изменения коры и зубчатого ядра мозжечка крыс в динамике после нанесения дефекта большеберцовой кости на фоне предшествующего 60-суточного введения бензоата натрия и тартразина в двух дозах.
Материал и методы исследования
Исследование выполнено на 350 белых беспородных крысах-самцах репродуктивного возраста с исходной массой тела 200±10 г, содержавшихся в стандартных условиях вивария (пластиковые клетки, температура 20–22 °С, влажность 40–45%) со свободным доступом к гранулированному корму и воде. Работу проводили в соответствии с Директивой 2010/63/EU Европейского парламента и Совета Европейского союза от 22 сентября 2010 г. о защите животных, используемых в научных целях; протокол исследования одобрен Комиссией по биоэтике Луганского государственного медицинского университета им. Святителя Луки (протокол № 2 от 25.03.2022).
В рамках единого эксперимента животные были распределены на 10 групп по 35 особей (по 7 на каждый из пяти сроков наблюдения). Распределение животных по группам и срокам выведения из эксперимента проводили случайным образом. Обозначения групп: К - контрольная группа; К+Д - группа изолированного дефекта; Б - бензоат натрия, Т - тартразин, число после буквы - доза в мг/кг массы тела; «+Д» - нанесение дефекта после курса введения добавки. В статье анализируются группы с нанесением дефекта и контрольная группа (К, К+Д, Б500+Д, Б1000+Д, Т750+Д, Т1500+Д; 210 животных). Четыре группы, получавшие те же добавки без нанесения дефекта (Б500, Б1000, Т750, Т1500; 140 животных), выводили из эксперимента в те же сроки; их данные использованы для прямого сопоставления с сочетанными группами и для двухфакторного дисперсионного анализа. Результаты по коре мозжечка в группах Б500 и Б1000 частично опубликованы ранее [15; 16]; данные групп Т750 и Т1500, а также данные по зубчатому ядру во всех группах без дефекта приведены в дополнительных материалах к статье.
Животные групп К и К+Д ежедневно (с 7:00 до 10:00) внутрижелудочно через зонд получали 1 мл 0,9% раствора натрия хлорида, остальных групп - в том же объеме раствор бензоата натрия (Eastman Chemical B.V., Нидерланды) в дозе 500 или 1000 мг/кг либо тартразина (ROHA Dyechem Pvt. Ltd., Индия) в дозе 750 или 1500 мг/кг массы тела в течение 60 суток; дозу рассчитывали ежедневно по результатам взвешивания. Продолжительность введения превышает стандартный 28-суточный тест с повторным введением и была выбрана для оценки последствий длительного (субхронического) поступления добавок.
Дозы планировали в 2022 г. как 100- и 200-кратные значения ДСД для человека, принятые в качестве референтных: 5 мг/кг для бензоата натрия (групповая ДСД бензойной кислоты и ее солей, установленная JECFA в 1996 г. [17]) и 7,5 мг/кг для тартразина (ДСД JECFA, действовавшая до 2016 г. [3]). Эти значения установлены для человека; межвидовой пересчет доз при планировании не выполняли, поэтому кратность ДСД носит условный характер. Относительно действующих ДСД (20 мг/кг в пересчете на бензойную кислоту и 10 мг/кг [2; 3]) использованные дозы соответствуют примерно 21- и 42-кратной ДСД бензоатов (500 и 1000 мг/кг бензоата натрия эквивалентны 424 и 847 мг/кг бензойной кислоты) и 75- и 150-кратной ДСД тартразина. При пересчете по площади поверхности тела (коэффициент для крысы 6,2 [18]) эквивалентные дозы для человека составляют около 81 и 161 мг/кг для бензоата натрия и 121 и 242 мг/кг для тартразина. Таким образом, режим введения многократно превышает реальное алиментарное поступление и предназначен для выявления структурных эффектов добавок, а не для моделирования пищевой нагрузки человека.
По окончании введения животным групп К+Д, Б500+Д, Б1000+Д, Т750+Д и Т1500+Д под эфирным масочным наркозом наносили сквозной дырчатый дефект диаметром 2,2 мм в проксимальном отделе диафиза обеих большеберцовых костей с помощью твердосплавного бора и эндодонтического мотора X-Smart (Dentsply Maillefer, Швейцария). Толщина кости в этой области (не менее 3,5 мм) позволяла создать сквозное отверстие без нарушения ее целостности и осевой нагрузки на конечность. Учитывая возможное влияние диэтилового эфира на центральную нервную систему, эфирный наркоз применяли как кратковременный управляемый вид анестезии; он выполнялся одинаково во всех группах с дефектом, включая группу К+Д, которая служила контролем в отношении операции и анестезии, а первое исследование мозжечка проводили не ранее чем через 3 суток после вмешательства. Животных (по 7 на срок) выводили из эксперимента декапитацией после ингаляции летальной дозы диэтилового эфира на 3, 10, 15, 24 и 45-е сутки после операции, что соответствует фазам воспаления, дифференцировки клеток, минерализации, ремоделирования и исхода репаративного остеогенеза; животных групп без дефекта выводили в те же сроки после окончания введения. Состояние костного регенерата в настоящей работе не анализируется: кристаллическую структуру биоминерала регенерата исследовали методом рентгеноструктурного анализа по ранее описанной методике [19]; результаты будут представлены в отдельной публикации.
После декапитации вскрывали черепную коробку, извлекали головной мозг и отделяли мозжечок по ножкам. Мозжечок фиксировали 24 ч в 10%-ном нейтральном забуференном формалине, промывали в проточной воде, обезвоживали в изопропиловом спирте возрастающей концентрации на гистопроцессоре MTP (SLEE Medical, Германия), заливали в парафиновую среду Histomix и на ротационном микротоме изготавливали серийные срезы толщиной 5–6 мкм, которые окрашивали гематоксилином и эозином и толуидиновым синим по Нисслю. Микрофотографии получали цифровой фотокамерой Olympus SP-500UZ (Olympus, Япония).
Морфометрию выполняли с помощью микроскопа Nikon Eclipse Ni, камеры Nikon DS-Fi3 и программы NIS-Elements BR 4.60.00 (Nikon, Япония) после калибровки по объект-микрометру по ранее описанной методике [20]. Ширину слоев коры и численную плотность нейронов определяли в 10 полях зрения на животное (кора - объектив ×20, площадь поля 0,085 мм²; зубчатое ядро - объектив ×10, площадь поля 0,340 мм²), площадь тел нейронов и их ядер - по 25 профилям каждого типа клеток на животное при объективе ×100, обводя в ручном режиме плазмолемму и кариолемму; измеряли только профили с различимым ядрышком. Для каждого животного рассчитывали среднее значение показателя, которое служило единицей статистического анализа. Морфометрическую оценку выполняли без кодирования препаратов (без ослепления); для уменьшения субъективности применяли единые критерии отбора полей зрения и клеточных профилей и одинаковые настройки калибровки для всех групп. Определяли 16 показателей: ширину молекулярного и зернистого слоев; численную плотность (клеток/мм²) нейронов молекулярного слоя, клеток-зерен и клеток Пуркинье; площадь профильного поля нейронов молекулярного слоя, клеток-зерен и клеток Пуркинье, площадь ядер клеток Пуркинье и их ядерно-цитоплазматическое отношение (ЯЦО); в зубчатом ядре - численную плотность и площадь крупных и мелких нейронов, площадь ядер и ЯЦО крупных нейронов. ЯЦО рассчитывали для каждого животного по формуле ЯЦО = Sя / (Sкл − Sя), где Sя - средняя площадь ядра, Sкл - средняя площадь профиля тела нейрона, включающая ядро.
Данные представлены в виде M±m, где M - среднее, m - стандартная ошибка среднего (n = 7 на срок). Нормальность распределения проверяли критерием Шапиро - Уилка, равенство дисперсий - F-критерием Фишера; при нормальном распределении и равенстве дисперсий применяли t-критерий Стьюдента, в остальных случаях U-критерий Манна - Уитни; в тексте приводятся точные значения p. Каждую сочетанную группу сравнивали с контролем и с группой К+Д соответствующего срока (по 80 сравнений: 16 показателей × 5 сроков), а также с группой, получавшей ту же добавку без нанесения дефекта. Для контроля ошибки I рода в пределах каждого семейства из 80 сравнений применяли процедуру Бенджамини - Хохберга (доля ложных открытий ≤ 0,05) [21] и более строгую процедуру Холма [22]. Совместное действие факторов оценивали двухфакторным дисперсионным анализом по схеме «доза добавки (0 / первая / вторая) × дефект (нет / есть)» отдельно для каждого вещества, показателя и срока (42 животных в каждом анализе); рассчитывали F-критерий, p и силу влияния η² = SSфактора / SSобщ × 100%. Расчеты выполняли в среде Python 3.11 (SciPy 1.17).
Результаты исследования и их обсуждение
Изолированное нанесение дефекта (группа К+Д) сопровождалось статистически значимыми отличиями от контроля в 6 из 80 сравнений (табл. 1–3). На 3-и и 10-е сутки численная плотность нейронов молекулярного слоя была меньше контрольной на 22,7% (p = 0,011) и 20,0% (p = 0,012), клеток-зерен - на 11,3% (p = 0,040) и 11,0% (p = 0,047). Площадь мелких нейронов зубчатого ядра на 10-е и 15-е сутки превышала контроль на 24,7% (p = 0,018) и 24,4% (p < 0,001); последнее отличие сохраняло значимость и после поправки Холма. Плотность клеток Пуркинье была ниже контроля на 6,3–9,9%, а площадь их перикарионов и ядер, как и площадь ядер крупных нейронов зубчатого ядра, превышала контроль (до 9,0%, 13,6% и 15,4% соответственно), однако эти различия статистически не значимы (p ≥ 0,11). Качественно в ранние сроки в молекулярном слое выявлялись обратимые изменения нейронов по типу острого набухания и гипохроматоза, а среди клеток Пуркинье - гиперхромные клетки (рис. 1). К 24–45-м суткам показатели группы К+Д от контрольных не отличались. Таким образом, при изолированной костной травме на 3–10-е сутки снижается численная плотность нейронов молекулярного и зернистого слоев, а к 10–15-м суткам увеличивается площадь мелких нейронов зубчатого ядра; увеличение размеров клеток Пуркинье и крупных нейронов носит характер тенденции.
Изолированная травма сказывалась и на органометрических показателях головного мозга: его длина в группе К+Д была меньше контрольной на 3, 10 и 45-е сутки (на 2,9–4,6%), ширина - на 10-е и 45-е сутки (на 4,3% и 2,5%), а масса на 45-е сутки составила 2,51±0,05 г против 2,62±0,01 г в контроле (p < 0,05). Следовательно, костная травма оказывает на головной мозг собственное, хотя и умеренное, влияние, которое необходимо учитывать при оценке сочетанных воздействий.
Таблица 1
Число статистически значимых отличий морфометрических показателей мозжечка от контроля и от группы К+Д на разных сроках после нанесения дефекта (из 16 показателей на срок, 80 сравнений на группу)
|
Группа |
Отличия от группы К (p < 0,05) |
От К после поправки (БХ / Холм) |
От К+Д, всего (БХ / Холм) |
От группы без дефекта |
|||||
|
3-и сут. |
10-е сут. |
15-е сут. |
24-е сут. |
45-е сут. |
всего |
||||
|
К+Д |
2 |
3 |
1 |
0 |
0 |
6 |
1 / 1 |
- |
- |
|
Б500+Д |
0 |
0 |
0 |
0 |
0 |
0 |
0 / 0 |
7 (2 / 1) |
0 |
|
Б1000+Д |
1 |
0 |
0 |
0 |
0 |
1 |
0 / 0 |
9 (2 / 2) |
0 |
|
Т750+Д |
3 |
2 |
2 |
1 |
0 |
8 |
1 / 1 |
17 (8 / 7) |
0 |
|
Т1500+Д |
6 |
5 |
4 |
3 |
0 |
18 |
9 / 3 |
27 (16 / 9) |
0 |
Примечание: БХ - поправка Бенджамини - Хохберга, Холм - поправка Холма (в пределах 80 сравнений группы). Составлено авторами на основе полученных данных в ходе исследования.
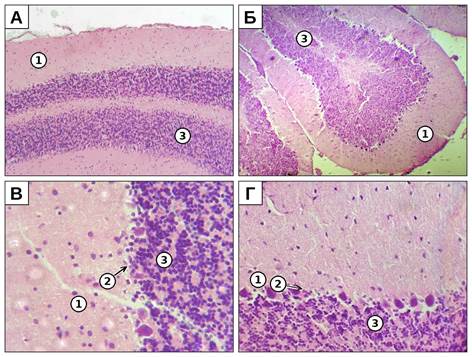
Рис. 1. Кора мозжечка крыс на 3-и сутки наблюдения: А, В - группа К; Б, Г - группа К+Д. А, Б - извилина коры (объектив ×10); В, Г - граница молекулярного и зернистого слоев (объектив ×40). 1 - молекулярный слой; 2 - клетки Пуркинье; 3 - зернистый слой.
Окраска гематоксилином и эозином.
Примечание: составлено авторами по результатам данного исследования
После предшествующего введения бензоата натрия изменения были минимальными: в группе Б500+Д отличий от контроля не выявлено, в группе Б1000+Д зарегистрировано одно - уменьшение численной плотности нейронов молекулярного слоя на 3-и сутки на 15,7% (p = 0,026), не сохранившее значимость после поправки на множественность сравнений. Площадь ядер клеток Пуркинье в группе Б1000+Д была меньше контроля на 4,5–11,4%, площадь ядер крупных нейронов зубчатого ядра - на 0,6–7,8% (p ≥ 0,14). Реактивного увеличения размеров нейронов, характерного для группы К+Д, не отмечалось, поэтому от группы изолированного дефекта группы Б500+Д и Б1000+Д отличались в 7 и 9 сравнениях - прежде всего меньшей площадью мелких нейронов зубчатого ядра на 10–15-е сутки (p = 0,0001–0,0008) и площадью ядер клеток Пуркинье (p = 0,007–0,018).
Предшествующее введение тартразина вызывало наиболее выраженные изменения, затрагивавшие прежде всего ядерный аппарат нейронов (табл. 2, 3; рис. 2). В группе Т750+Д площадь ядер клеток Пуркинье была уменьшена на 3–24-е сутки на 31,4–20,7% (p = 0,0001–0,019), их ЯЦО - на 3-и и 15-е сутки на 31,2% (p = 0,010) и 26,0% (p = 0,016), площадь ядер крупных нейронов зубчатого ядра - на 3-и и 10-е сутки на 22,3% (p = 0,018) и 23,3% (p = 0,004). В группе Т1500+Д площадь ядер клеток Пуркинье была уменьшена на 3–24-е сутки на 38,5–27,1% (p от < 0,0001 до 0,002), их ЯЦО - на 34,8–26,4% (p = 0,004–0,050), площадь перикарионов - на 3–15-е сутки на 16,3–12,6% (p = 0,002–0,028), площадь ядер крупных нейронов зубчатого ядра - на 3–24-е сутки на 33,3–16,8% (p = 0,0007–0,046). Кроме того, в этой группе на 3-и сутки была снижена численная плотность клеток-зерен (на 14,5%, p = 0,012), а на 3-и и 10-е сутки - нейронов молекулярного слоя (на 20,0%, p = 0,007, и на 16,4%, p = 0,003). После поправки Бенджамини - Хохберга в группе Т1500+Д значимыми остались 9 из 18 отличий (площадь ядер клеток Пуркинье на 3–24-е сутки, площадь их перикарионов и ЯЦО на 3-и сутки, площадь ядер крупных нейронов зубчатого ядра на 3–10-е сутки, плотность нейронов молекулярного слоя на 10-е сутки), после поправки Холма - 3 (площадь ядер клеток Пуркинье на 3–15-е сутки); в группе Т750+Д обеими процедурами подтверждено уменьшение площади ядер клеток Пуркинье на 3-и сутки. Плотность клеток Пуркинье в группах тартразина была меньше контроля на 5,2–12,3% без статистической значимости (p ≥ 0,16). От группы К+Д группы Т750+Д и Т1500+Д отличались в 17 и 27 сравнениях из 80.
Таблица 2
Морфометрические показатели коры мозжечка крыс после нанесения дефекта большеберцовой кости (M±m, n = 7)
|
Сутки |
Группа |
Плотность нейронов молекулярного слоя, кл/мм² |
Плотность клеток-зерен, кл/мм² |
Площадь клеток Пуркинье, мкм² |
Площадь ядер клеток Пуркинье, мкм² |
ЯЦО клеток Пуркинье |
|
3-и |
К |
1529,5±63,4 |
26006±1037 |
385,9±14,1 |
121,9±5,5 |
0,474±0,037 |
|
К+Д |
1182,9±98,0* |
23062±742* |
420,8±30,5 |
128,5±7,6 |
0,462±0,043 |
|
|
Б500+Д |
1359,4±62,2 |
25458±1761 |
381,6±12,8 |
115,9±5,4 |
0,448±0,039 |
|
|
Б1000+Д |
1289,3±55,8* |
24734±472 |
367,8±16,7 |
108,1±6,9 |
0,431±0,044 |
|
|
Т750+Д |
1275,2±87,4 |
24422±846 |
349,2±14,6 |
83,7±3,3*# |
0,326±0,031*# |
|
|
Т1500+Д |
1223,4±39,1* |
22229±760* |
323,1±7,5*# |
75,0±3,2*# |
0,309±0,027*# |
|
|
10-е |
К |
1475,9±48,3 |
25657±664 |
382,1±12,0 |
119,0±5,1 |
0,460±0,032 |
|
К+Д |
1180,5±86,9* |
22833±1087* |
416,5±21,7 |
131,8±4,5 |
0,491±0,054 |
|
|
Б500+Д |
1385,5±64,3 |
25625±796 |
378,0±10,1 |
115,8±4,7# |
0,451±0,035 |
|
|
Б1000+Д |
1361,9±78,3 |
25105±1038 |
367,9±9,5 |
109,0±3,8# |
0,424±0,019 |
|
|
Т750+Д |
1270,9±87,9 |
24390±740 |
358,7±16,3 |
86,8±6,0*# |
0,336±0,046 |
|
|
Т1500+Д |
1234,2±45,1* |
24123±1602 |
332,0±16,2*# |
79,7±3,3*# |
0,325±0,027*# |
|
|
15-е |
К |
1414,7±109,9 |
26127±661 |
387,4±15,1 |
119,7±5,9 |
0,454±0,031 |
|
К+Д |
1182,1±75,4 |
24712±1048 |
418,3±16,0 |
136,0±5,2 |
0,494±0,039 |
|
|
Б500+Д |
1383,9±81,2 |
26668±1317 |
382,4±19,2 |
117,7±2,9# |
0,464±0,044 |
|
|
Б1000+Д |
1292,4±58,2 |
25538±907 |
369,8±10,8# |
111,8±4,8# |
0,440±0,032 |
|
|
Т750+Д |
1220,0±50,6 |
25503±1290 |
367,5±15,8# |
90,5±4,7*# |
0,336±0,029*# |
|
|
Т1500+Д |
1219,5±102,8 |
25083±1324 |
338,6±12,1*# |
82,9±3,8*# |
0,334±0,031*# |
|
|
24-е |
К |
1462,8±94,1 |
25771±1147 |
384,0±15,1 |
119,3±8,3 |
0,467±0,053 |
|
К+Д |
1333,4±85,7 |
24716±579 |
404,3±7,8 |
133,4±7,0 |
0,499±0,039 |
|
|
Б500+Д |
1461,0±72,4 |
26108±1015 |
384,7±14,8 |
119,7±4,8 |
0,466±0,039 |
|
|
Б1000+Д |
1324,8±78,9 |
25722±1179 |
370,6±11,5# |
110,5±8,1 |
0,443±0,062 |
|
|
Т750+Д |
1281,8±35,9 |
25420±678 |
367,0±17,5 |
94,6±3,8*# |
0,365±0,041# |
|
|
Т1500+Д |
1272,8±45,5 |
25248±1562 |
351,9±19,3# |
87,0±2,4*# |
0,339±0,025*# |
|
|
45-е |
К |
1485,5±61,5 |
25915±599 |
385,7±13,3 |
120,0±6,3 |
0,476±0,065 |
|
К+Д |
1389,9±78,5 |
25247±1080 |
393,7±10,7 |
116,5±3,9 |
0,428±0,031 |
|
|
Б500+Д |
1593,9±98,5 |
27044±901 |
394,1±24,4 |
123,7±6,0 |
0,492±0,063 |
|
|
Б1000+Д |
1474,8±47,3 |
26663±1132 |
377,9±14,8 |
114,7±6,3 |
0,461±0,061 |
|
|
Т750+Д |
1386,5±81,2 |
25985±1273 |
368,5±14,9 |
113,1±8,1 |
0,472±0,070 |
|
|
Т1500+Д |
1368,0±78,6 |
25860±858 |
360,9±12,2# |
106,5±6,0 |
0,434±0,043 |
Примечание: * - статистически значимое отличие от группы К (p < 0,05); # - от группы К+Д (p < 0,05). ЯЦО = Sя / (Sкл − Sя). Составлено авторами на основе полученных данных в ходе исследования.
Во всех сочетанных группах изменения были максимальными на 3-и сутки и затем уменьшались: число статистически значимых отличий от контроля на 3, 10, 15, 24 и 45-е сутки составило 3, 2, 2, 1 и 0 в группе Т750+Д и 6, 5, 4, 3 и 0 в группе Т1500+Д (табл. 1, рис. 2). На 45-е сутки ни в одной группе отличий от контроля не выявлено, хотя площадь ядер клеток Пуркинье в группе Т1500+Д оставалась меньше контрольной на 11,3% (p = 0,145).
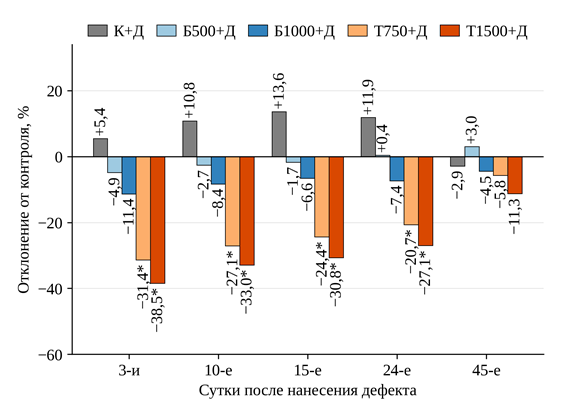
Рис. 2. Площадь ядер клеток Пуркинье в группах с нанесением дефекта большеберцовой кости, % отклонения от контроля соответствующего срока (0 - уровень контроля).
Над столбцами указаны значения отклонения; * - статистически значимое отличие от контроля (p < 0,05).
Примечание: составлено авторами по результатам данного исследования
Отделы зубчатого ядра реагировали на сочетанное воздействие неодинаково (табл. 3).
Качественно на 3-и сутки в группе Т750+Д в ганглионарном слое коры выявлялись сморщенные клетки Пуркинье с гомогенной гиперхромной цитоплазмой и нечетким ядром и единичные клетки-тени. В зубчатом ядре в группе К крупные нейроны располагались равномерно и имели четко контурированные ядро и ядрышко; в группе Б1000+Д наряду с такими нейронами встречались единичные сморщенные гиперхромные клетки, а в группе Т750+Д - многочисленные сморщенные гиперхромные нейроны веретеновидной формы, окруженные зоной перицеллюлярного отека (рис. 3). После введения тартразина изменения затрагивали прежде всего магноцеллюлярный отдел: на 3-и сутки площадь ядер крупных нейронов в группах Т750+Д и Т1500+Д была меньше контрольной на 22,3% и 33,3% соответственно (p = 0,018 и p = 0,0007), тогда как снижение численной плотности мелких нейронов в этих группах (на 13,9% и 17,4%) статистической значимости не достигало (p ≥ 0,32). После введения бензоата натрия площадь ядер крупных нейронов от контроля значимо не отличалась, а плотность мелких нейронов в группе Б1000+Д была ниже контрольной на 5,1–9,3% на протяжении всего наблюдения (p ≥ 0,47). При изолированном дефекте увеличивалась площадь мелких нейронов (на 24,7% и 24,4% на 10-е и 15-е сутки), а площадь ядер крупных нейронов имела тенденцию к увеличению (на 15,4% на 15-е сутки, p = 0,11). Различия в поведении отделов носят характер тенденции и могут отражать неодинаковую чувствительность нейронов магно- и парвоцеллюлярного отделов к двум добавкам, что требует проверки другими методами.
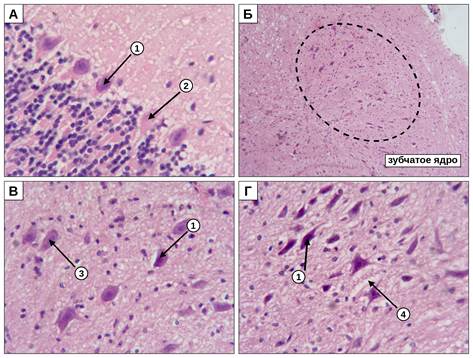
Рис. 3. Мозжечок крыс на 3-и сутки наблюдения: А - кора, группа Т750+Д (объектив ×40); Б - зубчатое ядро (обведено пунктиром), группа К (объектив ×10); В - зубчатое ядро, группа Б1000+Д (объектив ×40); Г - зубчатое ядро, группа Т750+Д (объектив ×40). 1 - сморщенные гиперхромные нейроны с гомогенной цитоплазмой и нечетким ядром; 2 - клетка-тень; 3 - нейрон с сохранными ядром и ядрышком; 4 - перицеллюлярный отек.
Окраска гематоксилином и эозином.
Примечание: составлено авторами по результатам данного исследования
Таблица 3
Морфометрические показатели нейронов зубчатого ядра мозжечка крыс после нанесения дефекта большеберцовой кости (M±m, n = 7)
|
Сутки |
Группа |
Плотность мелких нейронов, кл/мм² |
Площадь мелких нейронов, мкм² |
Площадь крупных нейронов, мкм² |
Площадь ядер крупных нейронов, мкм² |
ЯЦО крупных нейронов |
|
3-и |
К |
374,0±41,0 |
59,4±3,2 |
498,2±27,8 |
133,0±8,6 |
0,386±0,049 |
|
К+Д |
332,0±20,6 |
66,9±5,8 |
532,9±34,3 |
149,7±11,3 |
0,423±0,066 |
|
|
Б500+Д |
360,5±25,7 |
60,4±3,6 |
505,2±31,0 |
132,0±6,2 |
0,374±0,040 |
|
|
Б1000+Д |
339,3±29,0 |
59,3±4,3 |
496,3±22,6 |
123,1±4,2# |
0,336±0,022 |
|
|
Т750+Д |
322,1±34,0 |
57,8±3,1 |
466,9±14,9 |
103,3±5,9*# |
0,291±0,024 |
|
|
Т1500+Д |
309,0±15,9 |
54,9±3,6 |
435,9±18,9 |
88,7±4,7*# |
0,258±0,017# |
|
|
10-е |
К |
381,7±28,6 |
61,0±3,4 |
504,4±29,4 |
136,9±7,9 |
0,416±0,076 |
|
К+Д |
328,7±34,0 |
76,1±1,3* |
544,8±30,5 |
154,3±8,3 |
0,399±0,019 |
|
|
Б500+Д |
362,2±42,7 |
61,7±3,2# |
508,8±31,7 |
136,6±7,1 |
0,391±0,051 |
|
|
Б1000+Д |
346,4±38,2 |
60,5±2,5# |
499,3±16,9 |
126,3±4,6# |
0,346±0,026 |
|
|
Т750+Д |
339,3±40,5 |
59,5±3,0# |
470,1±30,3 |
105,0±4,6*# |
0,303±0,032# |
|
|
Т1500+Д |
319,3±21,6 |
56,4±2,4# |
441,9±19,3# |
94,7±5,7*# |
0,283±0,033 |
|
|
15-е |
К |
365,4±32,9 |
58,8±2,3 |
497,4±17,6 |
130,0±9,8 |
0,356±0,029 |
|
К+Д |
317,3±31,5 |
73,2±2,0* |
536,3±15,4 |
150,0±6,3 |
0,390±0,018 |
|
|
Б500+Д |
354,1±32,4 |
59,9±2,2# |
508,1±21,5 |
131,9±10,4 |
0,373±0,052 |
|
|
Б1000+Д |
344,0±37,3 |
58,5±1,8# |
500,9±34,8 |
121,5±4,9# |
0,331±0,023 |
|
|
Т750+Д |
337,5±25,9 |
57,3±2,6# |
474,4±23,1# |
105,9±5,6# |
0,300±0,033# |
|
|
Т1500+Д |
321,8±24,8 |
54,6±1,5# |
443,8±20,7# |
99,6±4,2*# |
0,294±0,017# |
|
|
24-е |
К |
351,5±24,0 |
60,0±2,8 |
501,8±22,1 |
136,7±8,1 |
0,381±0,030 |
|
К+Д |
310,3±30,3 |
63,7±3,0 |
513,0±34,3 |
145,0±7,0 |
0,409±0,035 |
|
|
Б500+Д |
344,9±38,2 |
61,6±2,4 |
511,6±17,4 |
134,0±7,2 |
0,367±0,038 |
|
|
Б1000+Д |
333,4±27,3 |
60,6±3,4 |
502,5±17,4 |
129,2±6,9 |
0,354±0,029 |
|
|
Т750+Д |
323,3±25,7 |
58,6±3,9 |
481,7±28,0 |
123,4±5,7# |
0,355±0,029 |
|
|
Т1500+Д |
312,7±29,5 |
55,6±2,6 |
456,4±24,1 |
113,7±6,4*# |
0,341±0,029 |
|
|
45-е |
К |
370,1±21,3 |
60,7±3,5 |
498,2±38,6 |
138,4±6,3 |
0,418±0,055 |
|
К+Д |
336,1±16,1 |
58,7±2,5 |
481,7±18,8 |
132,1±8,9 |
0,389±0,043 |
|
|
Б500+Д |
367,4±22,5 |
62,3±3,4 |
508,4±34,6 |
141,9±6,4 |
0,411±0,044 |
|
|
Б1000+Д |
351,3±27,4 |
61,5±3,4 |
499,8±31,0 |
137,6±7,2 |
0,404±0,048 |
|
|
Т750+Д |
343,7±22,7 |
59,3±2,4 |
484,4±25,1 |
134,9±5,9 |
0,397±0,034 |
|
|
Т1500+Д |
333,4±26,3 |
57,3±3,0 |
457,9±20,7 |
132,1±9,2 |
0,416±0,038 |
Примечание: * - статистически значимое отличие от группы К (p < 0,05); # - от группы К+Д (p < 0,05). ЯЦО = Sя / (Sкл − Sя). Составлено авторами на основе полученных данных в ходе исследования.
При одинаковой кратности референтной ДСД (100- и 200-кратной) группы тартразина отличались от групп бензоата натрия в 10 (Т750+Д и Б500+Д) и 14 (Т1500+Д и Б1000+Д) сравнениях из 80 - преимущественно по площади ядер и ЯЦО клеток Пуркинье и площади ядер крупных нейронов зубчатого ядра, тогда как между дозами одного вещества различий не выявлено. Сочетанные группы не отличались от групп, получавших те же добавки без нанесения дефекта, ни в одной из четырех пар (0 из 80 сравнений в каждой).
Результаты двухфакторного дисперсионного анализа для основных показателей приведены в таблице 4 (полностью - в дополнительных материалах). Для тартразина статистически значимое влияние фактора «доза» выявлено в 34 из 80 анализов; наибольшая сила влияния отмечена для площади ядер клеток Пуркинье (η² = 62,9–79,4% на 3–24-е сутки, p < 0,001) и площади ядер крупных нейронов зубчатого ядра (η² = 35,7–65,5%, p < 0,001). Для бензоата натрия влияние дозы было значимо в 10 анализах, и его сила не превышала 34,9% (площадь ядер клеток Пуркинье на 10-е сутки). Фактор «дефект» был значим в 5 (бензоат натрия) и 3 (тартразин) анализах, наиболее выраженно - для площади мелких нейронов зубчатого ядра на 10–15-е сутки (η² = 12,2–18,0%). Статистически значимое взаимодействие факторов «доза × дефект» выявлено лишь в 4 (бензоат натрия) и 6 (тартразин) анализах из 80 - для плотности нейронов молекулярного и зернистого слоев и ширины зернистого слоя на 3–10-е сутки и площади мелких нейронов зубчатого ядра на 10–15-е сутки (η² = 8,6–24,4%). Таким образом, статистически значимое взаимодействие факторов в большинстве анализов не выявлено; поскольку при α = 0,05 около 4 из 80 анализов могут оказаться значимыми случайно, единичные эффекты взаимодействия следует рассматривать как предварительные.
Таблица 4
Результаты двухфакторного дисперсионного анализа «доза добавки × дефект» для основных показателей мозжечка (F; p; η², %)
|
Показатель |
Сутки |
Доза |
Дефект |
Доза × дефект |
|
Бензоат натрия |
||||
|
Плотность нейронов молекулярного слоя |
3 |
1,16; 0,324; 4,4 |
1,88; 0,179; 3,5 |
6,48; 0,004; 24,4 |
|
Плотность клеток-зерен |
3 |
0,22; 0,805; 1,1 |
0,04; 0,834; 0,1 |
2,49; 0,097; 12,0 |
|
Площадь ядер клеток Пуркинье |
3 |
4,80; 0,014; 20,5 |
1,20; 0,281; 2,6 |
0,01; 0,993; 0,0 |
|
Площадь ядер клеток Пуркинье |
15 |
10,64; < 0,001; 31,9 |
7,10; 0,011; 10,7 |
1,12; 0,336; 3,4 |
|
ЯЦО клеток Пуркинье |
3 |
0,52; 0,599; 2,8 |
0,11; 0,743; 0,3 |
0,15; 0,863; 0,8 |
|
Площадь мелких нейронов ЗЯ |
10 |
7,73; 0,002; 22,4 |
10,48; 0,003; 15,2 |
3,56; 0,039; 10,3 |
|
Площадь мелких нейронов ЗЯ |
15 |
9,88; < 0,001; 24,8 |
14,37; < 0,001; 18,0 |
4,78; 0,014; 12,0 |
|
Площадь ядер крупных нейронов ЗЯ |
3 |
4,72; 0,015; 19,2 |
2,88; 0,098; 5,9 |
0,39; 0,679; 1,6 |
|
Тартразин |
||||
|
Плотность нейронов молекулярного слоя |
3 |
2,15; 0,131; 8,6 |
1,35; 0,252; 2,7 |
4,31; 0,021; 17,1 |
|
Плотность клеток-зерен |
3 |
6,86; 0,003; 23,5 |
0,14; 0,714; 0,2 |
4,31; 0,021; 14,7 |
|
Площадь ядер клеток Пуркинье |
3 |
72,41; < 0,001; 79,4 |
1,55; 0,222; 0,8 |
0,06; 0,941; 0,1 |
|
Площадь ядер клеток Пуркинье |
15 |
60,59; < 0,001; 73,8 |
4,77; 0,036; 2,9 |
1,17; 0,322; 1,4 |
|
ЯЦО клеток Пуркинье |
3 |
16,41; < 0,001; 47,6 |
0,00; 0,975; 0,0 |
0,06; 0,944; 0,2 |
|
Площадь мелких нейронов ЗЯ |
10 |
14,57; < 0,001; 35,1 |
10,35; 0,003; 12,5 |
3,70; 0,035; 8,9 |
|
Площадь мелких нейронов ЗЯ |
15 |
13,46; < 0,001; 33,9 |
9,66; 0,004; 12,2 |
3,40; 0,044; 8,6 |
|
Площадь ядер крупных нейронов ЗЯ |
3 |
28,76; < 0,001; 59,7 |
1,98; 0,168; 2,1 |
0,44; 0,649; 0,9 |
Примечание: число степеней свободы - 2 и 36 для фактора «доза» и взаимодействия, 1 и 36 для фактора «дефект»; ЗЯ - зубчатое ядро. Составлено авторами на основе полученных данных в ходе исследования.
Полученные данные позволяют разграничить вклад двух факторов. Изменения при изолированном дефекте затрагивают прежде всего плотность нейронов молекулярного и зернистого слоев, модулирующих активность клеток Пуркинье, а увеличение размеров нейронов нарастает к 15-м суткам и исчезает к 24–45-м суткам. Такая динамика совпадает с периодом нарушения опороспособности конечности и перестройки локомоторного стереотипа. Мозжечок обеспечивает адаптацию локомоции на основе ошибок сенсорного прогноза [23], а освоение нового двигательного навыка, в отличие от простой двигательной нагрузки, вызывает у взрослых крыс синаптогенез и гипертрофию астроцитов в коре мозжечка [24; 25]. Кроме того, ноцицептивная импульсация модулирует активность клеток Пуркинье через бергмановскую глию [26]. Поэтому увеличение размеров нейронов при изолированном дефекте авторы рассматривают как возможное проявление функциональной нагрузки, а не токсического повреждения.
В сочетанных группах, особенно после введения тартразина, такой реакции не наблюдалось, а площадь ядер и ЯЦО нейронов уменьшались. Уменьшение размеров ядра может отражать снижение функциональной, в том числе синтетической, активности нейронов, однако морфометрические данные не позволяют оценить ее непосредственно: для такого заключения необходимы гистохимические, иммуногистохимические или ультраструктурные исследования. Выявленные изменения согласуются с данными о роли оксидативного стресса, воспаления и апоптоза в нейротоксичности обеих добавок [4; 5; 8] и о более выраженном повреждении коры мозжечка при действии тартразина [6; 7]. Можно предположить, что системная воспалительная реакция при переломе, сопровождающаяся активацией глии в головном мозге [10; 11], усиливает повреждение нейронов, антиоксидантный резерв которых снижен предшествующей интоксикацией. Однако единичные эффекты взаимодействия факторов и отсутствие различий между сочетанными группами и группами без дефекта указывают, что в условиях эксперимента вклад такого механизма, если он существует, невелик. Результаты следует интерпретировать с учетом высоких доз добавок, небольшой численности подгрупп и числа проведенных сравнений, поэтому основное внимание уделено отличиям, сохранившим значимость после поправки на множественность сравнений.
Полученные данные имеют прежде всего фундаментальное значение, раскрывая механизмы нейротоксичности пищевых добавок в эксперименте: они показывают, что предшествующее длительное введение высоких доз тартразина и в меньшей степени бензоата натрия изменяет морфометрический ответ мозжечка на травму опорно-двигательного аппарата. У животных, не получавших добавок, ответ на костный дефект проявлялся значимым увеличением площади мелких нейронов зубчатого ядра и тенденцией к увеличению размеров клеток Пуркинье и крупных нейронов и их ядер; после предшествующего введения тартразина такого ответа не наблюдалось, а площадь ядер нейронов уменьшалась. Дальнейшее изучение целесообразно направить на оценку эффектов добавок в дозах, близких к действующим ДСД, на обратимость изменений в более отдаленные сроки и на функциональную характеристику нейронов.
Заключение
Изолированное нанесение дефекта большеберцовой кости сопровождается умеренными и обратимыми изменениями коры и зубчатого ядра мозжечка крыс: снижением численной плотности нейронов молекулярного и зернистого слоев на 3–10-е сутки и увеличением площади мелких нейронов зубчатого ядра на 10–15-е сутки. На фоне предшествующего 60-суточного введения пищевых добавок в высоких дозах морфометрическая картина мозжечка определяется преимущественно видом и дозой добавки: после введения бензоата натрия отличия от контроля единичны, после введения тартразина уменьшаются площадь ядер и ЯЦО клеток Пуркинье и площадь ядер крупных нейронов зубчатого ядра (уменьшение площади ядер клеток Пуркинье сохраняет значимость после поправки на множественность сравнений), а увеличения размеров нейронов, характерного для изолированной травмы, не наблюдается. Изменения максимальны на 3-и сутки, к 45-м суткам статистически значимые отличия от контроля не выявляются. Статистически значимое взаимодействие факторов «доза × дефект» выявлено лишь в единичных анализах в ранние сроки.
Конфликт интересов
Финансирование
Библиографическая ссылка
URL: https://www.science-education.ru/article/view?id=34738 (дата обращения: 25.10.2026).
DOI: https://doi.org/10.17513/spno.34738